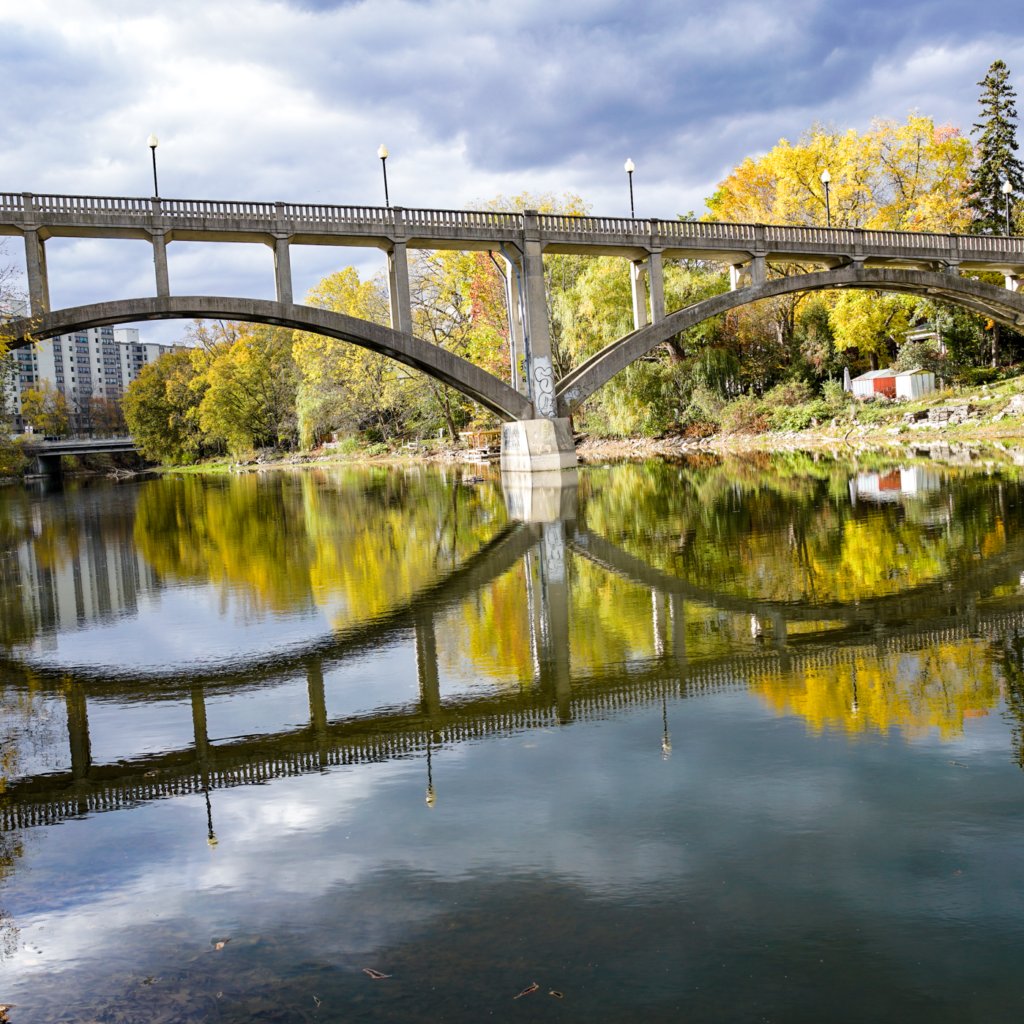
Ősszel, a nappalok rövidülésével és a levegő lehűlésével megkezdődik a lombhullató fák leveleinek öregedése – így nevezi a szakirodalom (szeneszcencia). Lelassul, majd leáll a folyadékkeringés, az egykor rugalmas, zöld falevelek törékennyé válnak, és fajonként eltérő színekben, ezen belül számtalan árnyaltot öltve búcsúznak. Alázatuk és engedelmességük lehatol a gyökerekig, és nincs az a gyönyörű napfelkelte, ami visszacsábíthatná a növényt az életbe. A levelek közben kizárólag a végtelen csend legtúlsó végéről hallható neszezéssel hullanak a mindenség deres homlokára, és egyesülnek árnyékukkal. Az egész erdő bólint, a gravitáció felelősséget vállal, amint a táj magára ölti a lombkoronát, miközben megőrzi valamennyi domborulatát. Erdőtűz ez is, méghozzá nedves és hideg, a köd lehet a füstje, lángja a búcsúzás és az örök rend közé szorult. A legtöbb ember számára ez az optikai paradicsom az emlékezetes, nem pedig a klorofill lebomlásának, a tápanyagok visszavételének lenyűgöző, ámde rejtett folyamata, mialatt a zöld teljes spektrumát átveszik a korábban árnyékolt pigmentek. A valóság igyekszik túlszárnyalni önmagát, és sokan érzik úgy, hogy mindez kedvükért történik, meg hogy a kihívások idején, úgymond, kiderül mi van a zöld alatt… Amikor ilyen intenzív, színes jelenetek között emlékezünk, elvész egy része a figyelmünknek, hajlamosak vagyunk elfelejteni, hogy a két fajnak eltérő szabályai vannak, és az emberi észlelések jellegzetes felismerései, maguk a speciális őszi érzések forrása nem a lombvesztés törvényszerűségében, hanem egészen másutt keresendő.
Lombhullás előtt, egy finoman szabályozó, rendkívül összetett mechanizmus megfordítja a tápanyagmérleget: a levelek klorofillja és fehérjéi, köztük a levél legnagyobb nitrogénkészletét adó, a fotoszintézis kulcsvegyülete, a Rubisco enzim is lebomlanak, és a felszabaduló, mobilis tápelemek java része, a háncsrészen keresztül visszakerül az ágak, a törzs (a kéreg és a bélsugarak), valamint a gyökerek élő raktározó szöveteibe. Nem a zord idő előérzete kényszeríti erre, nem sötétség követeli magának az elevenséget, hanem maga az élet intézkedik, ami hamarosan a látóhatár alá szorul, de nem véglegesen. Elszáradnak és lehullanak a lombok, hogy rendelkezésre álljanak a virágzáshoz; egy háborítatlan folyamatban a vég és a cél ugyanaz, persze a remény szűk korlátai között. Ha visszamegyünk a kezdetekhez, egészen a forrásig, a természeti jelenség szemén ugyanaz a könnycsepp lóg, mint ami búcsúzáskor. Csak nekünk olyan nehéz egyeztetni a végleteket, mert algebrai kérdésként kezeljük, holott szigorú összefüggés az érkezés öröme és a veszteség fájdalma között áll fenn, abban is csupán homályos összefüggés mutatkozik, de ez elég ahhoz, hogy a törvényeket esztelenül ne hagyjuk figyelmen kívül. Arányokról ezúttal nem szeretnénk.
A visszanyert nitrogén fehérjék (keményítő) formájában telel át, hogy a többi tartalékkal együtt a tavaszi rügyfakadást szolgálja. Míg a levelek nyáron a farészen keresztül folyamatosan kapták a gyökerek által felvett ásványi tápanyagokat, ősszel ezekből nettó leszállítókká válnak: a nitrogén és a foszfor nagyjából fele vagy annál is több jut így vissza, viszont a kalcium és más nehezen mozdítható elemek koncentrációja az öregedés során még nő is, s végül java részük a levéllel együtt lehull. A „vissza” kifejezés szó szerint értendő, hiszen ezeket az ásványi anyagokat eredetileg a gyökerek vették fel, és a farészen át jutottak a lombba. Ha kiterítünk egyetlen évet, vagy egy évtizedet, patyolattiszta művet látunk, amit szentség old a teremtett akaratba, és ami végtelenül és folyamatosan alkot, egészen könnyedén, szelíden, maga az ember pedig a márvány, a szobor.
A nitrogén főként a fehérjékből szabadul fel, a foszfor főként a nukleinsavakból és a sejtmembránok foszfolipidjeiből, ami nemcsak a folyamat mechanikáját, hanem irányát is egyértelműen jelzi: a sejtszintű lebomlás irreverzibilis, és nem hasonlít a régészethez, vagyis ha nem ismernénk az eredetit, a maradványokból nehezen lehetne rekonstruálni az egykori élet működését. Összevethető egy olyan szituációval, hogy a régészetnél maradjunk, amikor egy minden bizonnyal rablott aranylánc előkerül egy sírból, de csak utolsó viselőjének személyazonossága és életvitele felderíthető, és szinte semmit nem tudhatunk meg a tárgy eredeti tulajdonosáról, az ékszer készítőjéről valamint korabeli szerepéről.
A fotoszintézissel előállított cukrok esetében más a helyzet: a levelek fejlődésük során már tavasszal önellátóvá válhatnak, később pedig saját szükségletükön felül a növény más részeit – köztük a törzs és az ágak vastagodásáért felelős osztódószövetet is táplálják. A kambium sejtosztódása azonban már a lomb öregedésének kezdete előtt leállhat, mikor a levelek még zöldek, vagyis ezek öregedése és a fa évelő részeinek téli nyugalma két összefüggő, de különálló folyamat, ugyanis működését nem pusztán a levelek felől érkező cukrok és hormonok mennyisége szabja meg: a nappalok hossza, a hőmérséklet és a fa belső szabályozása is befolyásolja, hogy mikor lassul le a sejtosztódás. Az évgyűrűk határát a növekedési időszak végén és a következő tavaszon képződő faanyag szerkezeti különbsége rajzolja ki, mondhatni azt is, hogy ezek őrzik a múltat, a napfény erejét, virágaik és leveleik emlékét. A fát tehát nem pusztán a pillanatnyi szükség működteti – és éppen ezt olyan nehéz megértenünk. Az áhítat azonban nem ebből az értetlenségből fakad: a feltáruló mintázat gazdagsága ébreszti bennünk.
Egyes elrugaszkodott nézetek szerint mindez a fák tapintatát jelzi, így igyekeznek a levelek súlyát csökkenteni, hogy leveleik földetéréskor ne sérüljenek meg, ha már menniük kell a természet szabálya szerint, aminek ők is alanyai, nem irányítói (Egy több növénycsoportot átfogó összesítésben a levelek száraz tömege öregedésük során átlagosan 24,2%-kal csökkent; Vergutz és mtsai.) Odalent jó esetben az avar várja őket, a korábbi években szőtt ugróponyva, útközben megélik, hogy mit ad a súlytalanság. A természetben egyetlen évszaki jelenség sem ismétlődik pontosan ugyanúgy, a valóság egységes, örök rend de folyton változó, úgyhogy sosem tudják milyen érkezésre számítsanak. Amit „természetesnek” nevezünk, az ugyan rendíthetetlen és izgalmasan változatos, az évszakok ívét kisebb-nagyobb eltérések hajlítgatják, a szél, az eső meg a fagy nem főnevek, hanem igék. Annyit mindenképpen el kell ismernünk, hogy nem tudjuk, miért éppen így alakul ahogy, de látjuk, hogy ezernyi egyedi szín jelenik meg egy befejezetlen állapotban, mielőtt a keserédesség megannyi árnyalata eluralja a lombkoronát. Hamarosan vége ennek, és a falevelek hullásában hallhatóvá válik a nehézkedés hangja, majd amint a nyár zörögve elvonul. Ugyanaz a hang valami érkezését is jelzi, távolabbiét, mint gondoljuk.
A levelek végül – a szakirodalom megfogalmazása szerint – úgymond „kémiai metszésével” válnak le a hajtásról, a leválás helyén pedig rögvest védőréteg is képződik. Talán csak sokadik újraolvasásra értjük meg, mit jelent mindez: a fa ezt a műveletet előrelátóan nem bízza sem a viharokra, sem a puszta rothadásra, nem engedi, hogy közönséges melléknevek közé kerüljön az, ami végső soron mindeddig dajkálta. Arról viszont semmit sem olvasunk, hogy mindez a levelek beleegyezésével vagy anélkül történik, és hogy kapnak-e előtte valamit – mondjuk egy kis mirhát, vagy mohapárnát, ígéretre. Egy ideig megy a huzavona, talán cukkolják is egymást, apró nevetésük az utolsó közös emlék. Szélcsendben még elbóbiskolnak, majd felriadva a látóhatárt figyelik, amely az eltűnt nyarat rejti, illetve a tavaszt – amely már tőlük függetlenül, de nem hozzájárulásuk nélkül alkothat. Tanakodnak, ki kezdje el, a gyenge napsütés letörölte ugyan az éjszaka hűvösét, de a szél már olykor tajtékzik, frontján pedig jégcsap lóg, amin átlátni a fagyokra. Maradnának még, hiszen hatalmas önbizalmat ad egy különleges csoporthoz tartozni, de késni sem szeretnének, és a táj ezüsttálcán kínálja a megoldást, mint kitárt ablak, elődeik múltjára. Mégiscsak jobb, ha a sorsszerű eseményben saját döntés is van: ennyi volt, és egy kezesebb fuvallattal beleszövik sorsukat a mindenség rendjébe. Lágy szellőben megmosdanak, körbenéznek, sóhajtanak majd bólintanak, és minden színpadias gesztus nélkül elrugaszkodnak.
Felfénylő arcukon megragadt az elmúlt tavasz öröme és az eljövendő reménysége, de sok más jelentés rétegződött fölé, de minden megszerethető, ha kitartóan nézzük. Velük együtt utazik a nyár, a tüzes napsütés, és követi őket az a nesz, amely suhanásuk védjegye. Lehullásuk az ősz homokórája, amelyet ideiglenesen az erdőkre bízott, és ha lefut, az ősz elveszíti fájdalmait.
Meggyőződésünk, hogy minden levél leválását kézfogás, ölelés és csók kísér, hallga’: csókok csobbannak a csendbe. Közben talán énekelnek is: egyelőre lekottázatlan és számunkra hallhatatlan kórusművet az őszi erdő katedrálisában. Az viszont minden kétséget kizáróan állítható, hogy integetnek, apró gesztussal jelzik a szabadságuk. Hogy erre hajazó szokásaink miatt látjuk-e így, vagy éppenséggel tőlük vettük át a búcsú egyezményes jelét – ez az a kérdés, amely miatt komoly tudósok is éjszakákon át forgolódnak az ágyukban. Az viszont tény, hogy szomorúság csak a mi oldalunkon van: úgymond jó volna valahol máshol lenni, mindenekelőtt életkorban – nem messze, csak egy-két lépéssel korábban. Néha előbbre, vagy talán midig így. Nem is tudhatjuk ilyenkor, gondolataink tintatartója tele ment színekkel, kavarog a szelekkel, szörföz a levelekkel.
Visszatérve a tárgyilagos leíráshoz: a fafajtól és az időjárástól függően más-más ütemben vándorolnak vissza az újrahasznosítható tápanyagok a még zöld, filigrán levelekből. A felhalmozott készletekből aztán a következő tavasszal az új hajtások részesülnek. A fa fokozatosan leüresedik, de ez viszonylagos. Ahhoz képest, amilyen nyáron volt, valóban így van; ahhoz képest viszont, amilyen a tél végén lesz, késő ősszel még mindig maradhat rajta néhány levél. Hogy megértsük, mi zajlik ilyenkor a lombban, és miért fontos a fának ez a csendes fázis, érdemes a tavasznál kezdeni a történetet.
Tavasztól nyárig: a levél mint raktár
Tavasszal, rügyfakadáskor a kibomló rügyeket, sekélyzöld, filigrán levelek növekedését eleinte még a fa korábban felhalmozott tartalékai táplálják, miután megszűnik a „téli kijárási tilalom”, és az erdő zöngés, száraz hangjába madarak kacagása vegyül. Ahogy növekednek és fotoszintézisük fokozatosan megerősödnek, egyre nagyobb részben maguk termelik meg a fejlődésükhöz szükséges szerves anyagokat, idővel pedig már a fa többi részének ellátásában is komoly szerepet vállalnak. Aztán beköszönt a nyári bőség ideje, amikor nem számolja egyik fél sem, hogy ki és honnan vagy mennyit, mert minden árad, és ki gondolna ilyenkor a szűkösséggel, a veszteséggel…, bár a fák már nyáron is halmoznak fel szénhidrát-tartalékot, aminek forgalma a nyár végén, ősz elején éri el a csúcsát, alig a zimankó gázlója előtt. A gyökerek vizet és oldott ásványi anyagokat vesznek fel a talajból, a levelek pedig a napfény energiájával vízből és szén-dioxidból cukrokat állítanak elő, fogalmazzuk meg tömören azt a folyamatot, amit igyekszünk minden részletében megérteni, de a megismerés mértékével semmiképpen sem csökken csodálkozásunk a biológiai folyamatok végtelen összetettségét illetően. Az így képződő szerves anyagok a fa egészének működését szolgálják, amelyik növekszik, izmosodik, gyümölcsöt terem és árnyékot ad. Meg jelzi a szelet és az esőt, és azt is, ha az ember mohó, vagy a klíma belefáradt. Közben a levelekben jelentős mennyiségű tápelem halmozódik fel: ezek a szövetek felépítéséhez és az életfolyamatok fenntartásához egyaránt szükségesek.
Nyáron a kifejlett levelek jelentős tápelemkészletet tartalmaznak. Nitrogénkészletük legnagyobb része fehérjékben található: ezek részt vesznek a sejtek szerkezetének kialakításában, enzimként pedig az anyagcsere-folyamatokat katalizálják. Ilyen kulcsfontosságú fotoszintetikus fehérje a bioszféra egyik legnagyobb mennyiségben előforduló enzimje, a Rubisco is, amely a szén-dioxid szerves vegyületbe építését katalizálja. Az így megkötött szénből a növény a fotoszintézis további lépéseiben cukrokat állít elő. A nitrogén emellett a nukleinsavak, a DNS és az RNS alkotórésze is, így a sejtosztódáshoz és a fehérjeszintézishez ugyancsak nélkülözhetetlen. A levél nitrogénkészletének kisebb hányada a fényenergiát elnyelő klorofillmolekulákba épül be: nitrogén tehát a levelek zöld színét adó festékanyag felépítéséhez is szükséges. Nitrogénhiány esetén visszaesik a fehérje- és a klorofillképződés, és felgyorsulhat a már meglévő fehérjék és klorofill lebontása. A klorofill fogyásával a levelek – rendszerint először az idősebbek – megsárgulnak, a növény növekedése lelassul. A fotoszintetikus fehérjék és a klorofill mennyiségének csökkenése gyengítheti a levelek fotoszintézisét, a kisebb zöld levélfelület pedig tovább korlátozza az egész növény szervesanyag-termelését.
Az ősz jelei
Ősz felé, ahogy rövidülnek a nappalok és hűvösödnek az éjszakák, a fák életműködése fokozatosan áthangolódik, és ha túl közel vagyunk hozzájuk, nem látjuk és követjük, hanem velük együtt átéljük. Ugyan Gergely-naptár nélkül élnek, mégis pontosan érzékelik a fény, a hőmérséklet és a vízellátás változásait, vagy ahogy mi fogalmazunk: a tél közeledtét. Ezek a külső ingerek a fa belső folyamataival együtt szabják meg, mikor kezdődjön és milyen ütemben haladjon a levelek őszi öregedése. A rezgő nyárnál (Populus tremula) például elsősorban a nappalok rövidülése adja meg a jelet, bár azt még nem tudjuk pontosan, hogy a fényváltozás melyik eleme indítja be a folyamatot (Fracheboud és mtsai). A lehűlés felgyorsíthatja a már megindult öregedést, ebből fakadó tápanyaellátás pedig sietteti, és így egy exponenciális folyamat áll elő, – fajonként változó, hogy melyik környezeti hatás mennyit nyom a latban. Jól van ez így, a szavak hátán nincs nyereg, amin a valóság belovagolna,
Az öregedés már akkor megindulhat, amikor a levelek még javában fotoszintetizálnak, de ez nem cáfolja, éppenséggel megerősíti a szabályozórendszer különlegességét, ami akkor is tudja dolgát, ha erre nem kényszerítik külső erők. Miközben a fény hasznosításáért felelős rendszer fokozatosan leépül, a sejtek nem állnak le: tervszerűen lebontják saját építőköveiket, az értékes tápanyagokat pedig olyan formába alakítják, amelyet a fa visszaszívhat és elraktározhat. Ehhez a bontáshoz és szállításhoz azonban energia kell, amelyet a fotoszintézis gyengülésével egyre inkább a mitokondriumokban zajló sejtlégzés biztosít (Keskitalo és mtsai). Az őszi levélöregedés időzítése így kényes egyensúlyra épül: ha a levél tovább marad zöld, hosszabb ideig termelhet szerves anyagot a fának, ha viszont korábban kezd leépülni, több idő marad a tápelemek – főként a nitrogén – kimentésére, mielőtt egy korai fagy elpusztítaná a még élő szöveteket.
Miért kockázat a téli lomb
Mérsékelt égövünk lombhullató fái számára télen a vékony, nagy felületű levelek megtartása több kockázatot jelentene, mint hasznot. A hideg, időnként átfagyó talajból alig pótolható az elpárolgó víz, a szöveteket fagykár fenyegeti, a lombon fennakadó hó pedig az ágakat terheli. A fagy nem egyszerűen azáltal károsítja a növényeket, hogy a víz megfagyva kitágul, méghozzá a szövetek rugalmasságát meghaladó mértékben, és szétfeszíti az életfunkciókat biztosító elemeket. Fokozatos lehűléskor a jég többnyire a sejteken kívüli (extracelluláris) térben, például a sejtfalakban és a sejtközötti terekben kezd kialakulni, és a jégképződés csökkenti a sejteken kívüli vízpotenciált, ezért a sejtekből víz áramlik ki, élő tartalmuk pedig összezsugorodik. Ez a kiszáradás a fagykárosodás egyik fő oka: ha mértéke meghaladja a sejtek tűrőképességét, károsíthatja a sejtmembránok szerkezetét és működését. Az intracelluláris jégképződés viszont az érintett sejt számára rendszerint végzetes (Pearce).
Ha a fa hagyná megfagyni és kárba menni a lombját, a levelekben tárolt fehérjék és ásványi anyagok java része elveszne számára: részben kimosódna az elhalt szövetekből, részben a szél és a csapadékvíz sodrásával eltűnne a fa közvetlen környezetéből. Igaz, a lomb nagy része a fa alá hullik, a benne maradt tápanyag tehát nem semmisül meg – csak lassan, részlegesen és más élőlényekkel versengve juthat vissza, jóval hosszabb és bizonytalanabb úton, nehezebb lenne a koratavaszi lábadozás.
Valamit tehát tenni kell – mondjuk mi, akik régebben tüzelőt, újabban némi anyagi tartalékot spájzolunk be a zordabb időszakra (és persze az sem hátrány, ha van néhány jó barátunk). A növények elképesztően precíz biológiai rendszere ismeri ezt a veszélyt, és a maga módján csodálatosan kezeli is – ezért lehetnek még mindig velünk. Vagy mi velük. A lombhullató fák életműködésének szerves része ez a felkészülés: a leveleket még életük utolsó szakaszában is hasznosítják, a búcsút gondos visszagyűjtés előzi meg, és a levelek elengedése egyszerre szolgálja az erőforrások megőrzését és a téli vízvesztség csökkentését.
Az örökzöld tűlevelűek – például az erdeifenyők, a lucfenyők és a cédrusok – más stratégiát követnek. Kis felületű, keskeny tűleveleiket viaszos védőréteg borítja, amely mérsékli a párologtatást, sejtjeik pedig a hideghez alkalmazkodva ellenállóbbá válnak a faggyal szemben; ebben egyebek mellett az oldott cukrok és más védőanyagok felhalmozása, valamint a sejthártyák összetételének átalakulása is szerepet játszik. Tűleveleiket rendszerint több éven át megtartják, és fokozatosan cserélik le. Nem minden tűlevelű örökzöld: a lombhullató tűlevelűek közé tartozó vörösfenyők ősszel elengedik tűleveleiket, de nem anélkül, hogy a tápanyagok java részét visszavennék. (Strimbeck és mtsai).
A visszagyűjtés – részletezés és összefoglalás
Őszre a lombhullató fa szénhidráttartalékai már feltöltődtek, a lehetőség szerint, gyenge levelei elvégezték feladatukat, és mikor éles karmaikkal a szelek végigszántják a lombkoronát, nyilvánvaló, hogy nemcsak érdemes, hanem kötelező elbocsátani őket. A nyári és kora őszi fotoszintézis során termelt cukrok egy részét a fa az ágak, a törzs és a gyökerek élő szöveteiben már elraktározta, mint volt szó róla, részben keményítőként, részben oldott formában. Ezek az energiatartalékok tartják életben télen a szöveteket, tavasszal pedig a rügyfakadáshoz és a növekedéshez nélkülözhetetlenek. A lehulló levél vázát adó szénvegyületekre a fa kevésbé szorul rá, de a nitrogénre, foszforra és más tápelemekre tavasszal nagy szüksége lesz. amikor a felvehető nitrogén vagy foszfor szűkössége korlátozhatja a növekedést. A levelek fehérjéiben, nukleinsavaiban és sejthártyáiban lekötött, illetve a sejtnedvben oldott tápelemek – a nitrogén, a foszfor, a kálium és a magnézium – visszanyerhető részét a fa ezért nem hagyja veszni. A lombhullás előtt a fa az elraktározott tápelemeknek köszönhetően tavasszal kevésbé függ attól, hogy éppen mennyi tud ezekből felvenni a talajból – ami különösen a rügyfakadás és a kihajtás idején döntő, amikor a tápanyagigény gyorsan nő, a hideg talaj viszont még korlátozhatja a gyökerek működését. Az elraktározott készletek így olyanok, mint a bankban őrzött tőke, akkor válik igazán hasznossá, amikor az új levelek és hajtások felépítésének eljött az ideje, a lehetőségek viszont korlátozottak. (Tixier és mtsai; Millard és Grelet; Vergutz és mtsai).
Egy összehangolt molekuláris szabályozórendszer visszafogja a klorofill képződését, majd elkezdi a lebontását. A fehérjék nagy része aminosavakra bomlik, a nukleinsavak és a membránok szétszereléséből pedig további újrahasznosítható anyagok szabadulnak fel. Az így visszanyert tápelemek jelentős részét a fa oldott szerves vegyületek és ionok formájában a háncsrészen – vagyis a floémen – át szállítja vissza a korábban említett raktárakba. A fehérjékből kimentett nitrogén főként aminosavakként teszi meg ezt az utat, pl. a nyárfákban egy része a kéreg élő sejtjeiben külön raktározó fehérjékbe épül be. Ezek a tartalékok a tavaszi növekedés megindulásakor újra lebomlanak, a felszabaduló elemek pedig a fakadó leveleket és a fiatal hajtásokat táplálják. (Stigter és Plaxton; Hörtensteiner és Kräutler; Cooke és Weih).
A nitrogén jelentős részét a levél fehérjéinek lebontásával nyeri vissza. Enzimek felszabadítják a klorofilból a magnéziumot, és felnyitják a molekula gyűrűs vázát, ezzel lehetővé válik a hozzá kötődő fehérjék lebontása is. Végül többnyire színtelen, ártalmatlan bomlástermékek keletkeznek. A fehérjékről levált klorofill továbbra is elnyeli a fényt, ám a felvett energiát átadhatja a környező oxigénmolekuláknak. Az oxigén így erősen reakcióképes állapotba kerülhet, és károsíthatja a sejtalkotókat. Éppen ezért a folyamat gondos szabályozást igényel. A fa egymásra épülő enzimreakciókkal ártalmatlanítja a klorofillt. A lebontás elején tehát felszabadul a színanyag központi magnéziumionja, amely újrahasznosulhat, majd felnyílik a molekula gyűrűs váza. A további átalakulások során javarészt színtelen bomlástermékek, úgynevezett fillobilinek keletkeznek, amelyek végül a levélsejtek vakuólumaiban halmozódnak fel. Lényeg, hogy a beavatkozással a sejtek egy ideig még életben maradhatnak, és a fa kimentheti a levélből a hasznosítható tápanyagokat. Magának a klorofillnak a nitrogénje viszont az említett vegyületekben marad, és a lehulló levéllel elvész. A színanyag lebontása mégis két fontos célt szolgál: egyrészt ártalmatlanítja a fényben veszélyessé váló szabad klorofillt, másrészt csak így férhet hozzá a fa a klorofillt kötő fehérjékhez, amelyekben nagyságrendekkel több nitrogén található. A klorofill saját nitrogénjét a növény azért nem nyeri vissza, mert az a megmaradó kisebb gyűrűkben túl stabilan kötődik, és csekély mennyisége miatt a kiszabadítása már nem érné meg. (Hörtensteiner és Kräutler).
Mennyit lehet így megmenteni? A visszagyűjtés hatásfoka elemenként, helyenként eltér. Leonardus Vergutz és munkatársai 86 vizsgálat adataiból, egy globális összesítésben becsülték meg a visszanyerés mértékét: Nitrogén (N) esetén átlagosan 62,1%-os a visszaszívási hatékonyság, foszfor (P) esetén 64,9%-os, kálium (K) 70,1%-os, magnézium (Mg) 28,6%, szén (C) 23,2%, kalcium (Ca) mindössze 10,9%. A szén (C), nitrogén (N), foszfor (P), kálium (K) és magnézium (Mg) visszaszívásának hatékonysága csökken, ha a növény egyébként is tápanyagban gazdag környezetben él (tehát a jóllétben élő növények „pazarolnak”). A kalcium visszaszívását viszont nem befolyásolja a talaj tápanyag-összetétele. A fő visszagyűjtött elemek tehát a nitrogén, a foszfor és a kálium. Ezek azonban többféle szárazföldi növény, köztük fák, cserjék és lágyszárúak összevont adatai, a lombhullató fás szárú zárvatermők csoportjában például a foszfor becsült átlagos visszanyerése 59 százalék volt. Egy-egy fánál az arányt a faj, a termőhely és az adott ősz időjárása is alakítja, és fajonként, évjáratonként erősen ingadozik. Egy túl korán érkező, kemény fagy megrövidítheti vagy megszakíthatja a még folyamatban lévő visszanyerést, és csökkentheti a visszagyűjtött tartalékot – ez azonban önmagában nem jelenti azt, hogy a tél végzetes lesz a fa számára (Wang és mtsai).
Az őszi színek
Ahogy a klorofill lebomlik, a levelek fokozatosan elveszítik zöld színüket, szoktuk hallani és mondani, bár ez így nem egészen pontos. A klorofill a kék és a vörös fényt nyeli el a legerősebben, a zöld fényből viszont a levél arányaiban többet ver vissza vagy enged át, aminek fotokémiai okai vannak. Ezért látjuk zöldnek a lombot – és ez a szín számunkra régóta az élet, az elevenség és a növekedés jelképe. Ősszel a klorofil lebomlásával párhuzamosan láthatóbbá válnak a levélben már nyáron is jelen lévő sárga és narancsszínű pigmentek, a karotinoidok – köztük a xantofillok. Némelyikük tovább megmarad az öregedő levélben, mint a klorofill, így színe egyre jobban érvényesül. A sárgulás tehát nem új festékanyagok képződésének, hanem a klorofill lebomlásának optikai következménye (Keskitalo és mtsai).
A vörös és bíbor árnyalatok másként is születhetnek: egyes fafajokban – például számos juharban – a színek jelentős részét adó antociánok éppen a levelek őszi öregedése során újonnan képződnek. Felhalmozódásuknak a levelek magas cukortartalma, a napsütés és a hűvös, de nem fagyos idő kedvez, a színeződés erőssége azonban fajonként és élőhelyenként is eltér (Keskitalo és mtsai.; Murakami és mtsai.).
A legelterjedtebb magyarázat szerint az antociánok fényvédő pajzsként működnek. Ahogy leépül a fotoszintézis gépezete, a levél egyre kevésbé képes hasznosítani a rá eső napsugárzást. A vörös pigmentek ilyenkor mérsékelhetik a még dolgozó sejtek fényterhelését (visszaverik a megfelelő hullámhosszokat), amíg a tápanyagok utolsó szállítmányai is el nem hagyják a levelet. Egyes fafajoknál kísérletek is igazolták az antociánok fényvédő hatását (Hoch és mtsai.), az eredmények azonban nem egybehangzók. A korai juhar (Acer platanoides) leveleinek vörösre színeződött részei például nem bizonyultak ellenállóbbnak az erős fénnyel szemben, mint a sárga részek. Felmerült az is, hogy az élénk őszi lombszín riasztó jelzésként befolyásolja egyes rovarok, például a levéltetvek tápnövényválasztását. Ez azonban nem tekinthető az őszi vörösödés általánosan igazolt magyarázatának (Archetti és mtsai; Mattila és Tyystjärvi).
Amikor elidőzünk az őszi erdő színei között, hálásak lehetünk a látásunkért. A fénynek csupán egy szűk tartományát érzékeljük, ám ez a keskeny sáv is elég ahhoz, hogy a látvány túlcsorduljon bennünk. Míg az emberi alkotások, pl. a barokk építészet egyes elemei becsapnak, ezzel szemben a természet elkápráztat. minden érdek nélkül, bár nem miattunk teszi, de részesít. Hűvös őszi hajnalokon, ha a szél is aládolgozik, az erdők megtelnek sóhajtásokkal, az elengedés finom neszeivel, a tisztások könnyesek és búcsúzók – miközben a ritkuló lombsátor fölött éppen kiszélesedik a látóhatár.
Az elválás
Fajonként és az időjárástól függően más-más ütemben a levelek így még utoljára megtámogatják a rendszert, amelyhez tartoznak. Miközben a fa még visszanyeri a hasznosítható anyagok egy részét a levélből, a levélnyél tövében már zajlanak a későbbi leválást előkészítő változások. A lebomló vegyületekből felszabaduló tápelemek szállítható formában, a háncsrész közvetítésével jutnak el a fa más részeibe. Visszagyűjtésükhöz ezért a háncsszállításnak még működnie kell. A tápelemek elszállításának lezárulása és a levél lehullása azonban nem feltétlenül esik egybe: a levél a visszagyűjtés befejeződése után is a fán maradhat egy ideig. Kutatók egy rezgő nyár (Populus tremula) megfigyelésekor például arra következtettek, hogy a tápelemek visszanyerése már több mint egy héttel az utolsó levelek lehullása előtt megállt, feltehetően a háncsszállítás megszűnése miatt (Keskitalo és mtsai).
A levelek leválása szabályozott, aktív életfolyamat, és képletesen úgy is mondhatnánk, hogy a fa maga oldja le őket az ágairól. A levélnyél tövénél húzódó sejtsávot leválási, más néven abszcissziós zónának nevezzük, működését több növényi hormon szabályozza. A növények növekedését és fejlődését irányító kulcshormon, amely a hajtáscsúcstól a gyökér felé áramolva fejti ki hatását az auxin. Ösztönzi a termések növekedését, és amíg bőségesen áramlik a levelekből, megakadályozza azok idő előtti lehullását (egyébként a növény több életfunkcióját meghatározza). Amíg a levéllemez sok auxint termel, és ez folyamatosan áramlik a levélnyél felé, az elválasztó réteg sejtjei, illetve a vonatkozó enzimek érzéketlenek a leválást beindító etilénre. Az is döntő lehet, hogy mennyi auxin van a levél felőli és mennyi a szár felőli oldalon, hogyan szállítódik a növényben, milyen koncentrációban van jelen az egyes szövetekben, és azok sejtjei mennyire érzékenyen reagálnak rá. Lényeg, hogy az öregedéssel csökken az auxinutánpótlás, az etilén ekkor már szabadabban érvényesülhet, és kifejtheti hatását: bekapcsolja a sejtfalbontó enzimek génjeit. A poligalakturonáz a sejteket összetartó pektines középlemezt bontja, a celluláz pedig a sejtfal cellulózvázát lazítja. A meggyengült réteg végül a levél súlya vagy a szél hatására elszakad, a szár felőli oldalon pedig parafás védőréteg zárja le a sebet. Ez a „biológiai sebkötözés” csökkenti a vízveszteséget, és megnehezíti a kórokozók behatolását. A levél egykori helyét végül apró levélripacs jelzi. (Patharkar és Walker; Jin és mtsai). Hasonló gátló hatást az almatermesztésben is hasznosítanak: bizonyos szintetikus auxinokat az érés időszakában a szüret előtti gyümölcshullás mérséklésére alkalmaznak.
Az avar, és a kör bezárul
A lehullott, még színes levelek sárga, narancssárga és vörös szőnyegként borítják be az erdő talaját. A talajlakó állatok felaprózzák az avart, a gombák és a baktériumok pedig lebontják szerves anyagait. A levelek széntartalmának egy része a lebontó szervezetek légzése révén szén-dioxidként tér vissza a levegőbe, más része a talaj szerves anyagát gyarapítja. Az avarban maradt tápelemek egy része a bomlás során fokozatosan a talajoldatba kerül, ahonnan ismét felvehetik őket a növények gyökerei – bár nem feltétlenül ugyanaz a fa kapja vissza őket, amely egykor a levelet nevelte. Ezeket a tápelemeket azonban a talaj élőlényei is felhasználhatják, egy részüket pedig a víz elszállíthatja. A fa tavasszal felhasználhatja az ősszel visszanyert és elraktározott készleteit, az avarban maradt tápelemek viszont hosszabb utat járnak be az erdő anyagkörforgásában. (Prescot; Vergutz és mtsai).
A bomlás sebessége a levelek összetételétől, a nedvességtől és a hőmérséklettől is függ. Egyes fafajok levelei több cseranyagot és nehezen bontható lignint – a sejtfalak egyik szilárdító anyagát – tartalmaznak, ami lassíthatja avarjuk lebomlását (Prescott; Cornwell és mtsai.). Hómentes, száraz téli napokon a tölgyesek és bükkösök avarja még sokáig zöröghet a talpunk alatt. Ha egy pillanatra behunyjuk a szemünket, talán jobban meghalljuk ezt a száraz, érdes neszt – de pusztán a zörgésből kevesen tudnánk megmondani, milyen fák között járunk.
Tavasszal, amikor a növekedés újra megindul, a gyökerekben, a törzsben és az ágakban elraktározott készletek táplálják a fakadó rügyeket és az új hajtásokat. Az új levelek így részben elődeik újrahasznosított anyagaiból épülnek fel, majd maguk is bekapcsolódnak a fa ellátásába – és a kör bezárul.
Attraversiamo
A lombhullás az erőforrások megőrzésének és a tél átvészelésének sokrétű, finoman összehangolt módja. Fölöslegesnek tűnhet, mégsem állhatjuk meg, hogy fel ne tegyük a kérdést: képes volna-e a mai tudomány és technika a semmiből megalkotni egy ilyen elengedési/visszanyerési folyamatot? Talán csak azért kérdezzük, mert szeretnénk valami nagyon okosnak tűnő bölcsességgel lezárni a gondolatmenetet. Csakhogy ilyen varázsbölcsesség nem létezik.
Csak az ismert, egyszerű igazság marad: át kell élni, meg kell tapasztalni. Vagy át kell menni rajta, és ezzel visszatérünk emberi világunk találkozásai és búcsúzásai közé. „Attraversiamo!” – „Nosza, keljünk át!” Elizabeth Gilbert Ízek, imák, szerelmek című könyvének ez az utolsó szava. A kötet egy válság utáni talpraállásról, spirituális útkeresésről szól, és érdemes elolvasnia annak, akit egy ilyen tapasztalat érzékeny leírása érdekel.
Az erdő életének ez a mozzanata egyúttal bevezetés is lehet az elengedés kérdéseibe. A hasonlatnak azonban megvannak a határai: az ember vesztségének feldolgozása nem követ olyan szigorú menetrendet mint a fák lombváltása. És ez rendjén van.
A növényi élet egyik legfontosabb feladatát a fotoszintézis kulcsenzime, a Rubisco végzi: megköti a levegő szén-dioxidját, hogy a növények cukrokat építhessenek belőle. Az enzimfehérje apró, zsebszerű aktív helyén megköt és reakcióképes állapotba hoz egy öt szénatomos cukorszármazékot (ribulóz-1,5-biszfoszfát), majd ehhez kapcsolja a szén-dioxidot. A keletkező, bomlékony hat szénatomos köztitermék két darab három szénatomos molekulára (3-foszfoglicerát) hasad – ez a Calvin–Benson-ciklus szénmegkötő lépése. A fényszakaszban termelt ATP és a redukálóerőt biztosító NADPH (Nicotinamide adenine dinucleotide phosphate) segítségével az említett 3-foszfoglicerátból három szénatomos cukorfoszfátok képződnek. A körfolyamat egyszerűsített mérlege szerint hat ilyen cukorfoszfátból öt a kiindulási ribulóz-1,5-biszfoszfát újraképzésére fordítódik, egy pedig nettó termékként kiléphet a ciklusból. A kilépő vegyületekből többek között keményítő és szacharóz épül fel; utóbbi a növény más részeibe is elszállítható. [1]
A Rubiscónak azonban van egy sajátos működési gyengesége: az aktivált cukorszármazékkal a szén-dioxid mellett az oxigén is képes reakcióba lépni. Ez a kettősség egyaránt összefügg az enzim ősi eredetével és reakciómechanizmusával. A Rubisco elődei jóval a légköri oxigén nagyarányú feldúsulása előtt alakultak ki, amikor az oxigénszegény környezetben ez a mellékreakció még aligha jelentett komoly hátrányt. Bár az evolúció során létrejöttek a szén-dioxidot hatékonyabban előnyben részesítő enzimváltozatok, az oxigénnel való reakció lehetőségét a szárazföldi növények Rubiscója sem tudta teljesen kiküszöbölni. [2]
A mai légkörben nagyságrendekkel több az oxigén (mintegy 21%), mint a szén-dioxid, amelynek aránya alig haladja meg a 0,04%-ot. Bár a két gáz eltérő mértékben oldódik a sejtek vizes közegében, és a Rubisco erősen a szén-dioxidot részesíti előnyben, az oxigénnel zajló mellékreakció mégis gyakori. Ennek aránya nem írható le egyetlen állandó számmal: a növényfaj, a hőmérséklet és mindenekelőtt az enzim környezetében kialakuló gázkoncentrációk határozzák meg. Az oxigénnel végbemenő reakció során egy három szénatomos 3-foszfoglicerát és egy két szénatomos melléktermék, 2-foszfoglikolát keletkezik. Az utóbbi közvetlenül nem hasznosítható a Calvin-ciklusban, felhalmozódva pedig fontos anyagcsere-enzimek működését gátolja. [3, 4]
Az oxigén megkötésével veszi kezdetét a fénylégzés. A kloroplasztiszokat, peroxiszómákat és mitokondriumokat összekapcsoló reakciósor a 2-foszfoglikolát széntartalmának nagy részét visszajuttatja a Calvin-ciklusba. Két ilyen, egyenként két szénatomos molekulából a hagyományos fénylégzési út végén egy három szénatomos 3-foszfoglicerát képződik, míg egy szénatom szén-dioxidként szabadul fel. A növény így a melléktermékek széntartalmának háromnegyedét visszanyeri, ám ezért energiával és szénveszteséggel fizet. Mivel a felszabaduló szén-dioxid egy részét a levél újra megkötheti, a fénylégzés biokémiai szén-dioxid-termelése nem feltétlenül egyezik meg a légkörbe ténylegesen kijutó mennyiséggel. [1, 5]
Ráadásul a fénylégzés mitokondriális szakaszában, a glicin átalakulásakor a szén-dioxiddal együtt ammónia is felszabadul, amely a sejtek vizes közegében nagyrészt ammóniumionként van jelen. Mivel felhalmozódása káros, nitrogénje viszont értékes tápelem, a növény a kloroplasztiszban újra aminosavakba építi. A glutamin-szintetáz és a glutamát-szintáz összehangolt működése ehhez ATP-t és redukálóerőt igényel; utóbbit a fotoszintetizáló levélben rendszerint a fényreakciókban redukált ferredoxin szolgáltatja. [5]
Meleg, száraz időben a fénylégzésből eredő veszteség tovább nőhet, mert három kedvezőtlen hatás adódik össze. Egyrészt a növény a párologtatási vízveszteség mérséklése érdekében szűkíti gázcserenyílásait, ami korlátozza a szén-dioxid utánpótlását; a levélben dolgozó Rubisco így egyre kevesebb szén-dioxidhoz jut, miközben az oxigén továbbra is bőségesen rendelkezésre áll. Másrészt a hőmérséklet emelkedésével a szén-dioxid vízben való oldhatósága arányaiban erősebben csökken, mint az oxigéné. Harmadrészt maga az enzim is veszít a szelektivitásából. Sok C3-as növény Rubiscójára 25 °C körül nagyjából 80–100 közötti szelektivitási tényező jellemző: ha a két gáz az aktív hely környezetében azonos oldott koncentrációban volna jelen, a szén-dioxiddal lezajló reakció ennyiszer lenne gyakoribb. Melegedéskor ez az előny mérséklődik, így változatlan oldott gázarányok mellett is nő az oxigénnel végbemenő reakciók részaránya. [6, 7]
Mindehhez hozzájárul, hogy a Rubisco kifejezetten lassú enzim: a C3-as növényekben 25 °C körül, kedvező szén-dioxid-ellátás mellett is másodpercenként csupán néhány szén-dioxid-molekulát képes megkötni aktív helyenként, miközben sok más anyagcsere-enzim ennél jóval gyorsabban dolgozik. A szárazföldi növényfajok nagy többségét kitevő C3-as növények – köztük a mérsékelt övi fák, a búza, a rizs és a szója – ezt a lassúságot hatalmas enzimmennyiséggel ellensúlyozzák. Ezekben a fajokban nincs a C4- vagy CAM-anyagcseréhez hasonló szén-dioxid-dúsító lépés: a gázcserenyílásokon beáramló gázt közvetlenül a mezofillumsejtek kloroplasztiszaiban működő Rubisco köti meg. A fotoszintézisnek ez az útja az első stabil szénmegkötési termék, a három szénatomos 3-foszfoglicerát után kapta a C3-as elnevezést. A Rubisco a C3-as levelek oldható fehérjéinek gyakran 30–50%-át teszi ki, így a bioszféra legnagyobb mennyiségben előforduló fehérjéi közé tartozik, ami egyben a fotoszintetizáló levelek magas nitrogénigényének is az egyik fő oka. [8, 9]
Az evolúció során azonban egyes növénycsoportokban olyan mechanizmusok alakultak ki, amelyek helyileg feldúsítják a szén-dioxidot a Rubisco körül. A C4-fotoszintézis elsősorban a fénylégzésből eredő veszteségeket szorítja vissza, emellett a vízfelhasználás hatékonyságát is javíthatja, míg a CAM-anyagcsere különösen a vízveszteség csökkentésében nyújt előnyt. Mindkét stratégia a Calvin-ciklus elé illeszt előzetes szén-dioxid-megkötő és -dúsító lépéseket, ám a cukrok felépítéséhez a Rubiscóra és a Calvin-ciklusra ezekben a növényekben is szükség van. [10, 11]
A C4-es növények többsége – például a kukorica és a cukornád – térben választja szét a szén-dioxid elsődleges megkötését és a Rubisco általi feldolgozását, két különböző sejttípus között osztva meg a munkát. Az első lépés a fotoszintetizáló alapszövetben, a mezofillumsejtekben zajlik, ahol a PEP-karboxiláz nevű enzim a szén-dioxidból képződő hidrogén-karbonát szénatomját egy három szénatomos vegyülethez, a foszfoenol-piruváthoz kapcsolja. Az így keletkező négy szénatomos oxálacetátról kapta a folyamat a C4 elnevezést. A PEP-karboxiláz döntő előnye, hogy nem katalizál a Rubiscóéhoz hasonló oxigenálási mellékreakciót. [10]
A megkötött szén négy szénatomos vegyületek – jellemzően malát vagy aszpartát – formájában jut át a levélerek körüli nyalábhüvelysejtekbe, ahol átalakulásuk során ismét szén-dioxid szabadul fel. Az itt működő Rubisco így helyileg feldúsított szén-dioxidhoz jut, ami erőteljesen visszaszorítja a fénylégzést. Ennek a biokémiai szivattyúnak azonban ára van: a szén-dioxid leadása után visszamaradó három szénatomos vegyületek visszatérnek a mezofillumsejtekbe, ahol a körfolyamat fenntartása – különösen a kiindulási szénmegkötő molekula újraképzése – többletenergiát (ATP-t) igényel. [10]
A CAM-növények – köztük a legtöbb kaktusz, számos más pozsgás faj és az ananász – időben különítik el a szén-dioxid éjszakai megkötését és nappali felszabadítását, rendszerint ugyanazon a sejten belül. Gázcserenyílásaikat főként az éjszakai órákban nyitják ki, amikor a hűvösebb, általában párásabb levegőben kisebb a párologtatási vízveszteség. A felvett szén-dioxidot a PEP-karboxiláz közreműködésével több lépésben almasavvá alakítják, amelyet a sejtek nagy, folyadékkal telt belső tereiben, a vakuólumokban tárolnak. [11]
Nappal, különösen a legmelegebb és legszárazabb órákban gázcserenyílásaik többnyire zárva maradnak, a fotoszintézishez szükséges szén-dioxidot pedig az éjszaka felhalmozott almasavból szabadítják fel. A Rubisco ezt a belső készletet használja fel, így a növény zárt gázcserenyílások mellett, csekély vízveszteséggel is képes folytatni a cukrok felépítését, miközben a belsőleg felszabaduló szén-dioxid a fénylégzést is mérsékli. A napi ritmus azonban fajonként és a környezeti viszonyoktól függően változhat: kedvező vízellátás mellett reggel és késő délután közvetlen nappali szén-dioxid-felvételre is sor kerülhet, egyes fajokban pedig a CAM-anyagcsere csak vízhiány hatására kapcsol be vagy erősödik fel. [11]
Mindez arra is rávilágít, miért maradt a C3-fotoszintézis a legelterjedtebb a Földön. Mivel a C3-as növényeknek nem kell külön szén-dioxid-dúsító körfolyamatot fenntartaniuk, hűvösebb környezetben, mérsékelt fényerősség és megfelelő vízellátás mellett ez az út energetikailag kedvezőbb lehet. A C4-es út előnye rendszerint melegben és erős megvilágításban mutatkozik meg, amikor a fénylégzés visszaszorítása bőven megtéríti a szén-dioxid-szivattyú többletköltségét. A CAM-anyagcsere elsősorban ott kifizetődő, ahol a vízzel különösen takarékosan kell bánni – legyen szó száraz éghajlatról vagy időszakosan kiszáradó élőhelyekről. [11, 12]
A fotoszintetikus utak elterjedését azonban nem pusztán ez az energiamérleg szabja meg: a növények törzsfejlődési múltja, levélszerkezete és életformája is sokat nyom a latban. A fásszárú fajok még a trópusi erdőkben is túlnyomórészt C3-asok, míg a C4-es fák ritka kivételnek számítanak. A mérsékelt övi erdők C3-as jellegét ezért nem lehet csupán egyetlen élettani előnnyel megmagyarázni. [13]
A foszfor többek között a nukleinsavakban – a DNS-ben és az RNS-ben –, a különféle sejtmembránok foszfolipidjeiben és az energiaforgalomban kulcsszerepet játszó ATP-ben van jelen, emellett oldott szervetlen foszfátként is megtalálható. A kálium oldott K⁺-ionként fordul elő, nagy része a sejtek folyadékkal telt üregeiben, a vakuólumokban található. A magnézium egy része a klorofillmolekulák központi atomját adja, más része szabad ionként vagy különféle molekulákhoz kapcsolódva vesz részt a sejtek működésében (Bar-On és Milo; de Bang és mtsai; Hörtensteiner és Kräutler).
A Rubisco – elnevezése is megér egy bekezdést (ribulóz-biszfoszfát-karboxiláz vegyületekre utal), 1979-ben az amerikai biokémikus, David Eisenberg humorosan alkotta meg, egyik kollegájának lelkes, de eredménytelen kutatási törekvéseinek egyik vegyületének nevével összekapcsolva.
[1] Szecowka, M. és mtsai. (2013). Metabolic Fluxes in an Illuminated Arabidopsis Rosette. The Plant
Cell, 25, 694–714. https://doi.org/10.1105/tpc.112.106989
[2] Bouvier, J. W., Emms, D. M. és Kelly, S. (2024). Rubisco is evolving for improved catalytic efficiency
and CO2 assimilation in plants. Proceedings of the National Academy of Sciences, 121, e2321050121.
https://doi.org/10.1073/pnas.2321050121
[3] Galmés, J. és mtsai. (2005). Rubisco specificity factor tends to be larger in plant species from drier
habitats and in species with persistent leaves. Plant, Cell & Environment, 28, 571–579.
https://doi.org/10.1111/j.1365-3040.2005.01300.x
[4] Flügel, F. és mtsai. (2017). The Photorespiratory Metabolite 2-Phosphoglycolate Regulates
Photosynthesis and Starch Accumulation in Arabidopsis. The Plant Cell, 29, 2537–2551.
https://doi.org/10.1105/tpc.17.00256
[5] Jamai, A., Salomé, P. A., Schilling, S. H., Weber, A. P. M. és McClung, C. R. (2009). Arabidopsis
Photorespiratory Serine Hydroxymethyltransferase Activity Requires the Mitochondrial
Accumulation of Ferredoxin-Dependent Glutamate Synthase. The Plant Cell, 21, 595–606.
https://doi.org/10.1105/tpc.108.063289
[6] Ku, S. B. és Edwards, G. E. (1977). Oxygen Inhibition of Photosynthesis I. Temperature Dependence
and Relation to O2/CO2 Solubility Ratio. Plant Physiology, 59, 986–990.
https://doi.org/10.1104/pp.59.5.986
[7] Yamori, W. és mtsai. (2006). Effects of Rubisco kinetics and Rubisco activation state on the
temperature dependence of the photosynthetic rate in spinach leaves from contrasting growth
temperatures. Plant, Cell & Environment, 29, 1659–1670. https://doi.org/10.1111/j.1365-
3040.2006.01550.x
[8] Orr, D. J. és mtsai. (2016). Surveying Rubisco Diversity and Temperature Response to Improve Crop
Photosynthetic Efficiency. Plant Physiology, 172, 707–717. https://doi.org/10.1104/pp.16.00750
[9] Bar-On, Y. M. és Milo, R. (2019). The global mass and average rate of rubisco. Proceedings of the
National Academy of Sciences, 116, 4738–4743. https://doi.org/10.1073/pnas.1816654116
[10] von Caemmerer, S. (2021). Updating the steady-state model of C4 photosynthesis. Journal of
Experimental Botany, 72, 6003–6017. https://doi.org/10.1093/jxb/erab266
[11] Gilman, I. S. és mtsai. (2023). The CAM lineages of planet Earth. Annals of Botany, 132, 627–654.
https://doi.org/10.1093/aob/mcad135
[12] Ehleringer, J. és Björkman, O. (1977). Quantum Yields for CO2 Uptake in C3 and C4 Plants:
Dependence on Temperature, CO2, and O2 Concentration. Plant Physiology, 59, 86–90.
https://doi.org/10.1104/pp.59.1.86
[13] Young, S. N. R. és mtsai. (2022). C4 trees have a broader niche than their close C3 relatives. Journal
of Experimental Botany, 73, 3189–3204. https://doi.org/10.1093/jxb/erac113
Hivatkozások
Archetti és mtsai. (2009) · Bar-On és Milo (2019) · Cooke és Weih (2005) · Cornwell és mtsai. (2008) · de Bang és mtsai. (2021) · Estiarte és Peñuelas (2015) · Fracheboud és mtsai. (2009) · Hoch és mtsai. (2003) · Hörtensteiner és Kräutler (2011) · Jin és mtsai. (2015) · Keskitalo és mtsai. (2005) · Kräutler (2016) · Mattila és Tyystjärvi (2023) · Millard és Grelet (2010) · Murakami és mtsai. (2008) · Patharkar és Walker (2018) · Pearce (2001) · Prescott (2010) · Stigter és Plaxton (2015) · Strimbeck és mtsai. (2015) · The Open University · Tixier és mtsai. (2019) · Vergutz és mtsai. (2012) · Wang és mtsai. (2024) · Gilbert, E.: Ízek, imák, szerelmek